南美超级胎牛血清999尝鲜特惠

TdT 末端转移酶:依托模板非依赖聚合活性,适配五大主流应用场景
 TdT 末端转移酶:依托模板非依赖聚合活性,适配五大主流应用场景

3
2026-11-17
末端脱氧核苷酸转移酶(Terminal Deoxynucleotidyl Transferase,TdT)是一种模板非依赖的DNA聚合酶,20世纪60年代从小牛胸腺中分离获得,天然表达于未成熟B淋巴细胞与胸腺细胞。它在免疫系统中承担一项特殊功能:抗体与T细胞受体基因重排时,V(D)J片段连接处由TdT随机插入数个核苷酸,这种不依赖模板的插入是免疫多样性的重要来源之一。
常规DNA聚合酶须先读取模板、再按碱基互补原则决定掺入何种核苷酸,因此必须有已知序列作为起点;TdT不依赖模板,只要底物存在游离3'-OH即可起始延伸,对仅含3个碱基的短片段同样有效。掺入何种核苷酸由体系中的dNTP决定,延伸长度则由酶量、反应时间与底物比例共同调控,产物既可以是单点标记,也可以是一段长尾。
这一特性决定了TdT在工具酶中的独特定位:面对序列未知的末端,杂交探针无从设计,模板依赖型聚合酶也无从下手;而TdT能够先将末端改写为一段可扩增、可测序或可成像的DNA,再交由成熟的下游体系处理。基于这一原理,TdT的应用可归纳为以下五类场景。
应用背景
细胞凋亡进入晚期后,核酸内切酶会在核小体之间切割基因组 DNA,琼脂糖电泳上表现为 180–200 bp 的梯状条带。这些断裂处的共同点是只暴露游离的 3′-OH:没有固定序列,也没有可杂交的位点,引物设计不了,探针也贴不上去。与 DNA ladder 电泳相比,使用TDT进行原位末端标记的价值在于保留组织形态——它能指出“是哪一个细胞死了”,而不只是“有多少细胞死了”,从而把凋亡按细胞类型、按空间位置统计出来。
TdT以断裂末端为受体掺入标记dUTP,并在同一末端连续加成,将单点标记放大为可被显微镜检出的荧光或显色信号;仅3 nt的短片段亦可作为底物,因此石蜡切片、冰冻切片与悬浮细胞可以共用一套反应逻辑。
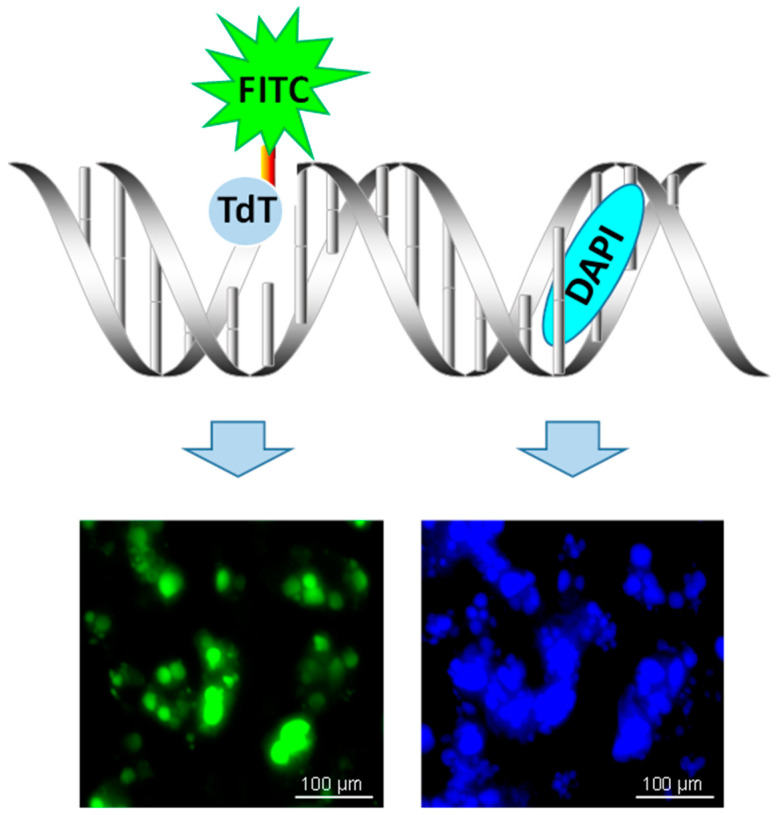
图1. TdT 以 DNA 断裂端的 3′-OH 为受体掺入标记 dUTP,DAPI 复染细胞核,实现凋亡细胞的原位标记与成像。[1]
应用背景
DNA甲基化是最常用的表观遗传标记之一,全基因组亚硫酸氢盐测序(WGBS)可在单碱基分辨率上对其定量,长期被视为该领域的金标准。方法核心是一步化学转化:亚硫酸氢盐将未甲基化的胞嘧啶脱氨为尿嘧啶(测序时读作T),5-甲基胞嘧啶保持不变,甲基化状态由此转化为可读的序列差异。常规方案是先接接头再转化,对于cfDNA、FFPE、古DNA及少量胚胎细胞这类常在pg级水平的样本,转化过程中出现断裂即可使双端带接头的分子退化为单端,造成有效文库大幅损耗。PBAT(post-bisulfite adaptor tagging)调换顺序,改为先转化、再以随机引物延伸引入接头,避开了断裂损耗,但两轮随机引物延伸又使插入片段偏短。两条路线各有取舍,低起始量单链建库因而需要一种同时兼顾分子回收与片段长度的方案。
TACS在PBAT先转化、后接接头的基础上,保留第一轮随机引物引入P1接头,再用TdT在单链DNA的3′-OH端加接2–4个核糖腺苷酸,随后由RNA连接酶将5′-磷酸修饰的接头直接连接至片段的天然末端。这一步选用ATP作为掺入底物:延伸在数个残基后自限性终止,尾长天然可控,无需额外引入ddNTP封端。接头连接于真实末端而非由引物在片段内部启动,插入片段长度因此得以回升;整套改造仅替换一步反应,无需重构建库体系。
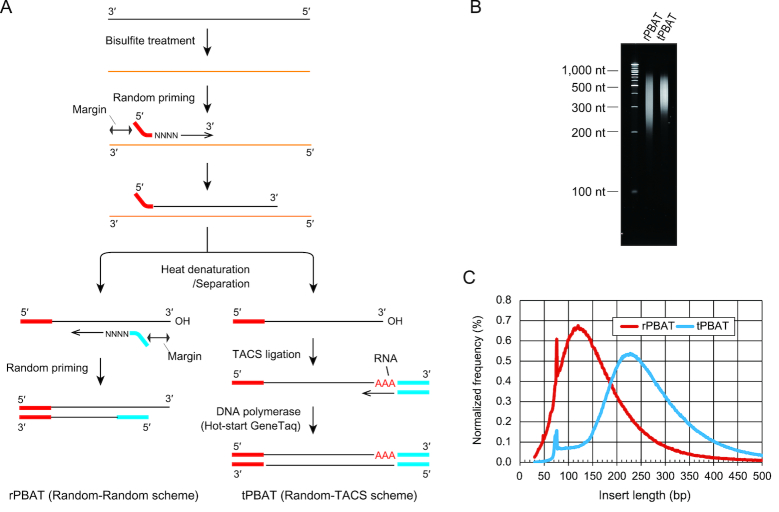
图2. rPBAT 与 tPBAT 建库流程对比:TACS 以末端核糖腺苷酸加尾 + 连接替代第二轮随机引物,插入片段显著变长。[2]
应用背景
转录本的5'端标记着转录起始位点、启动子选择方式与首外显子拼接位置。基因克隆获取完整开放阅读框、lncRNA确认全长、病毒基因组与抗体可变区获取末端序列,均以这一段为准。cDNA末端快速扩增(RACE)的思路是:在已知区段设计基因特异引物,向未知方向延伸。向3'方向有天然poly(A)尾可用,而向5'方向则没有任何可退火的序列。
使用TDT在一链cDNA末端人为补加一段通用序列。基因特异引物逆转录得到一链 cDNA,去除 RNA 并纯化后,由 TdT 在cDNA的3'端添加 dATP 尾,随后锚定 oligo(dT) 引物退火、二链合成,再以两轮巢式 PCR 提高特异性。
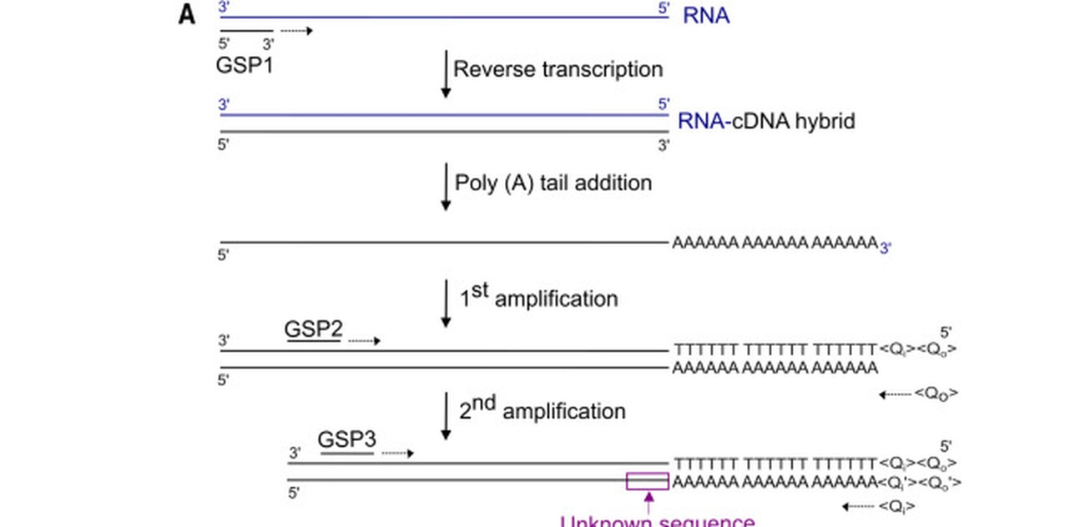
图3. 经典 5′ RACE 流程:GSP1 逆转录 → TdT 催化加尾 → 锚定引物延伸 → 两轮巢式扩增。[3]
应用背景
miRNA 只有约 22 nt,家族成员之间常常只差一两个碱基;循环肿瘤 DNA 在血清里的丰度更低,二者都属于典型的短序列、痕量靶标。检测这类靶标通常分两级来做:先用等温扩增把一次识别事件复制成大量产物,再把这些产物转换成可读的荧光、电流或显色信号。第一级决定“有多少”,第二级决定“看不看得见”。真正的麻烦在第二级——扩增产物是随机序列的单链 DNA,不同靶标之间没有共同的序列特征,既设计不出一条通用探针,也找不到一套通用引物去捕获它们。
TdT 在这一环节承担信号转换:在放大产物的 3′-OH 端掺入生物素标记 dUTP,再由链霉亲和素—辣根过氧化物酶把生物素转换为电化学或荧光信号。无论扩增出什么序列,末端都是同一个底物,一种读出模块因此可以服务任意靶标。
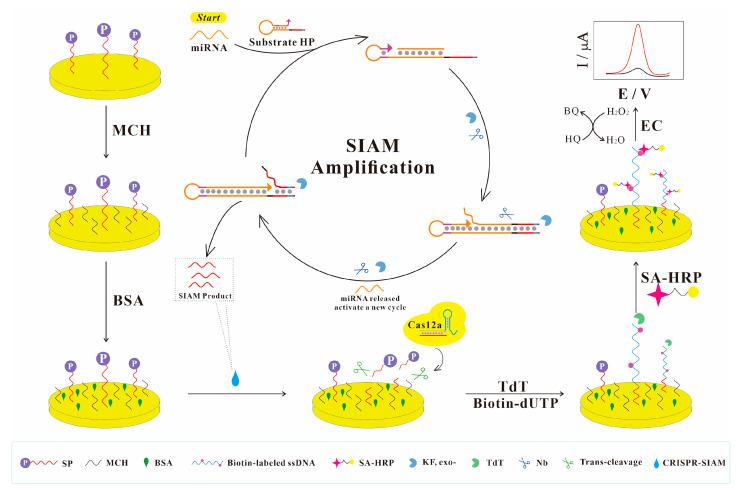
图4. SIAM 循环放大 → 电极捕获 → TdT 生物素标记 → SA-HRP 电化学读出的级联流程。[4]
应用背景
多细胞生物的谱系追踪,要在不破坏样本的前提下观察百万量级的细胞:每一次分裂、每一次分化都要被记录下来,最后还原成一棵树。早期的办法是染料标记、荧光报告基因或病毒条形码,分辨率和通量都有限;以 CRISPR 为基础的 DNA 记录器换了思路,把瞬时发生的细胞事件写成基因组上的永久改变,再靠测序读回来。但记录方式本身决定了信息能存多久:靠 indel 累积的方案会出现趋同——同一个缺失或插入可能在不同克隆里独立发生,也可能随着细胞分裂被逐步擦除,记录累积到一定程度就饱和了。
CHYRON 体系由稳定表达 Cas9 与同源引导 RNA 的工程细胞、单一位点的记录基因座以及 TdT 组成:Cas9 在固定位点切割产生双链断裂,TdT 识别断点暴露的 3′-OH 并模板非依赖地插入随机核苷酸;新序列改变原有识别位点,下一轮切割落在更新位置,插入的物理顺序即事件发生的时间顺序,记录只增不减。
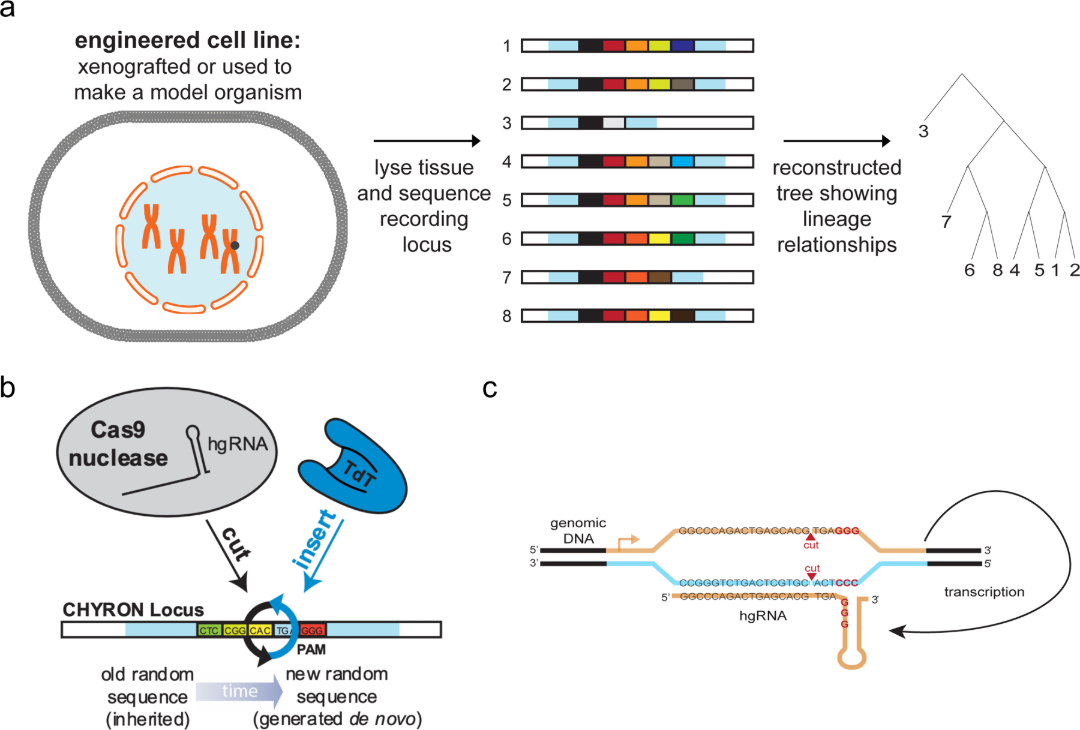
图5. CHYRON 写入原理:Cas9 在记录位点切割,TdT 于断点插入随机核苷酸,插入顺序即事件顺序。[5]
针对上述五类场景,翌圣生物可提供 TdT 单酶及配套的建库、检测与定量试剂,覆盖从方法摸索到常规样本检测的不同需求。货号可直接点击查看产品详情。
|
应用场景 |
流程节点 |
推荐产品 |
货号 |
|
凋亡原位检测 |
通透处理 |
Thermolabile Proteinase K |
|
|
末端标记 |
Terminal Deoxynucleotidyl Transferase |
||
|
单链与低起始量建库 |
亚硫酸氢盐转化 |
Hieff® DNA Bisulfite Conversion Kit |
|
|
末端加腺苷酸 |
Terminal Deoxynucleotidyl Transferase |
||
|
3′ 接头连接(常规路线) |
E. coli DNA Ligase |
||
|
二链合成 |
Klenow Fragment (3′→5′ exo-) |
||
|
转化后 ssDNA 定量 |
ssDNA Assay Kit |
||
|
5′ RACE |
逆转录 |
Hifair® Ultra Reverse Transcriptase |
|
|
cDNA 3′ 端加尾 |
Terminal Deoxynucleotidyl Transferase |
||
|
产物定量 |
dsDNA HS Assay Kit |
||
|
二链合成 |
Klenow Fragment (3′→5′ exo-) |
||
|
高保真PCR扩增 |
Hieff Canace®Veritas Long PCR Master Mix (No Dye) |
||
|
超灵敏核酸检测 |
级联放大 |
ArCas12a Nuclease |
|
|
末端标记 |
Terminal Deoxynucleotidyl Transferase |
||
|
谱系追踪与 DNA 写入 |
断点随机核苷酸写入 |
Terminal Deoxynucleotidyl Transferase |
|
|
位点扩增后定量 |
dsDNA HS Assay Kit |
[1] Gavrieli Y, Sherman Y, Ben-Sasson S A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation[J]. Journal of Cell Biology, 1992, 119(3): 493–501.
[2] Miura F, Shibata Y, Miura M, et al. Highly efficient single-stranded DNA ligation technique improves low-input whole-genome bisulfite sequencing by post-bisulfite adaptor tagging[J]. Nucleic Acids Research, 2019, 47(15): e85.
[3] Frohman M A, Dush M K, Martin G R. Rapid production of full-length cDNAs from rare transcripts: amplification using a single gene-specific oligonucleotide primer[J]. Proceedings of the National Academy of Sciences of the USA, 1988, 85(23): 8998–9002.
[4] Liang Z, Zhang J, Zhang S. Engineering a CRISPR-mediated dual signal amplification-based biosensor for miRNA determination[J]. Biosensors, 2026, 16(1): 17.
[5] Loveless T B, Grotts J H, Schechter M W, et al. Lineage tracing and analog recording in mammalian cells by single-site DNA writing[J]. Nature Chemical Biology, 2021, 17(6): 739–747.